本网讯(通讯员 杨航)近日,我校农学院陈锋教授团队在国际顶级学术期刊iMeta上发表了题为“Infection mechanisms of Rhizoctonia cerealis in wheat”的长篇研究论文。本研究通过大规模收集和分离小麦纹枯病致病菌株,构建禾谷丝核菌高质量基因组及全基因组变异图谱,并结合病原菌转录组、GWAS分析,鉴定出禾谷丝核菌侵染小麦的关键效应蛋白RcPL3,详细阐明了RcPL3通过调控小麦TaHDA9-TaRHC1A-TaRBOH3介导的活性氧免疫途径促进纹枯病发生的全新分子通路,并筛选出可用于纹枯病绿色防控的小分子化合物,为小麦纹枯病抗病育种与绿色病害防控提供关键理论支撑和候选资源。
小麦纹枯病是一种在全世界温带地区普遍发生的土传病害,主要由禾谷丝核菌(Rhizoctonia cerealis,Rc)引起。据全国农技推广网不完全统计,纹枯病在我国发生面积年均1.2亿亩左右,是我国重大病虫害之一,其中在河南大部、山东大部、安徽大部、江苏中北部偏重发生。然而,目前纹枯病致病机制鲜有系统解析,病原菌如何突破小麦免疫系统防线的关键机制仍不明朗。
收集和分离小麦纹枯病致病菌株:持续7年(2014-2020年)从中国30个纹枯病高发地区收集1683个具有典型纹枯病症状小麦植株(Figure 1A,B)。通过单菌丝分离法,分离纯化得到335个纹枯病致病相关菌株,ITS测序表明79.7%的为禾谷丝核菌(Rhizoctonia cerealis, Rc),明确其为我国纹枯病主要致病菌,同时也分离到F. pseudograminearum, A. alternata, C. tenuissimum, C. cochliodes等致病菌株(Figure 1C)。选用矮抗58、周麦18、中国春和豫麦49四个不同抗性等级的小麦品种对所有267个Rc进行菌株致病性测定,不同菌株病情指数(DI)变化范围为11.75–75.44,平均DI分别为42.98、41.12、47.65和47.00,所有菌株接种小麦后均引起典型纹枯病症状(Figure 1D),其中16个菌株(含R0301;DI ≥ 60)为强致病菌株,13个菌株(含R1-8、R10-1;DI ≤ 30)为弱致病菌株,为后续比较基因组学研究提供了理想材料;不同地理来源菌株致病性差异显著(Figure 1E),提示致病性存在区域分化。
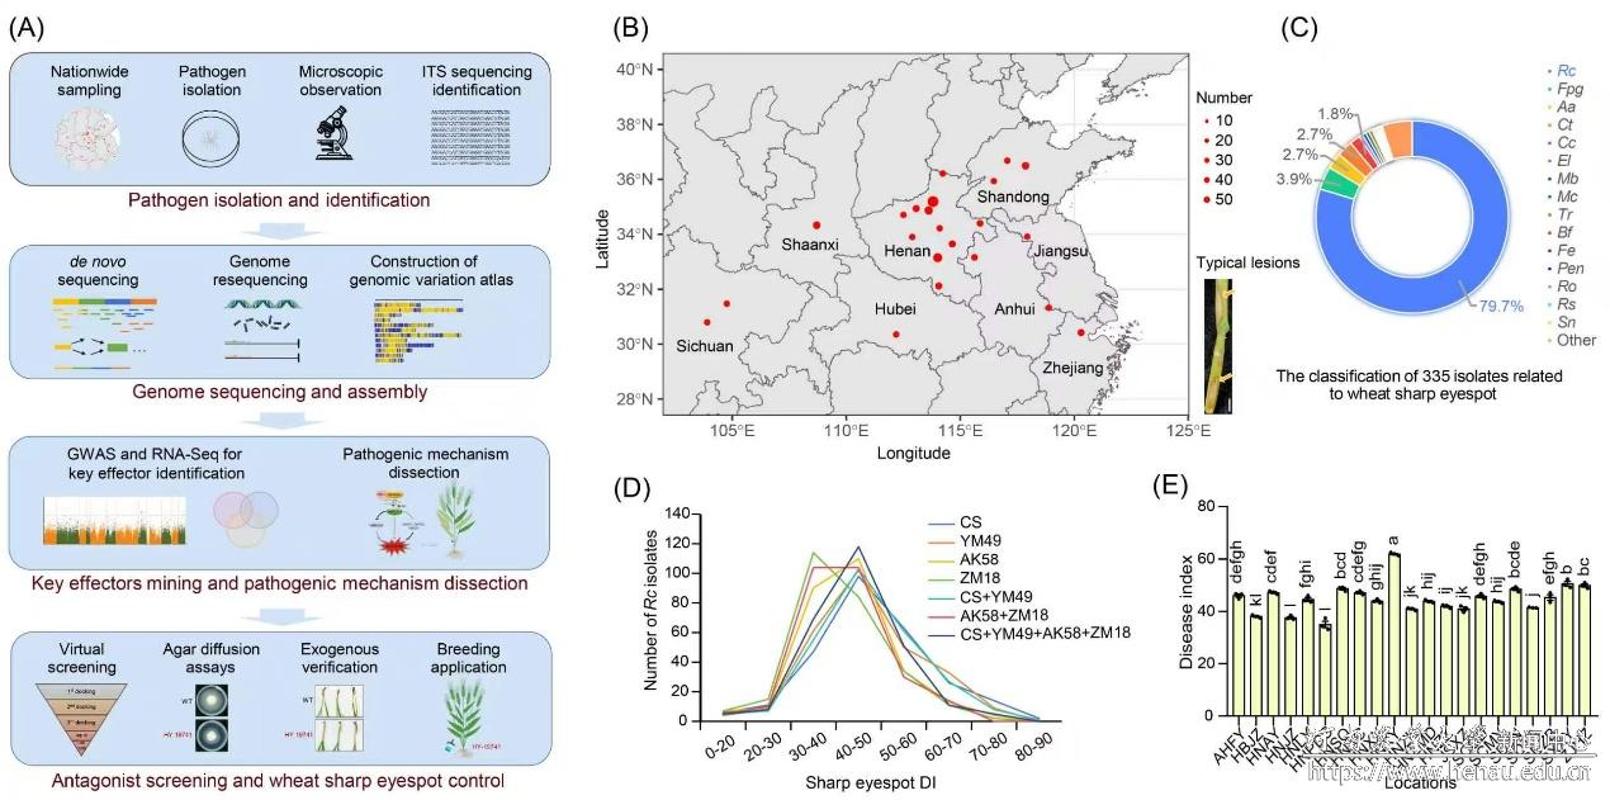
图1. 小麦纹枯病(SE)病原菌的收集与鉴定
构建禾谷丝核菌基因组图谱与变异图谱:该研究进一步选取5株代表性Rc菌株开展基因组从头测序,并对其中3株菌株完成染色体水平基因组组装,获得禾谷丝核菌高质量基因组图谱(图2A–E),并获得了禾谷丝核菌全基因组水平上的效应子库。OrthoFinder聚类表明,Rc核心基因家族高度保守,同时存在一定规模的非核心基因家族(图2F–I)。通过对207株菌株进行重测序,共鉴定出719,791个高质量SNP,构建了Rc基因组变异图谱(图2J)。基因组变异与Rc致病性表型的共分析显示,不同地理来源菌株呈现明显的致病性差异(图2K)。
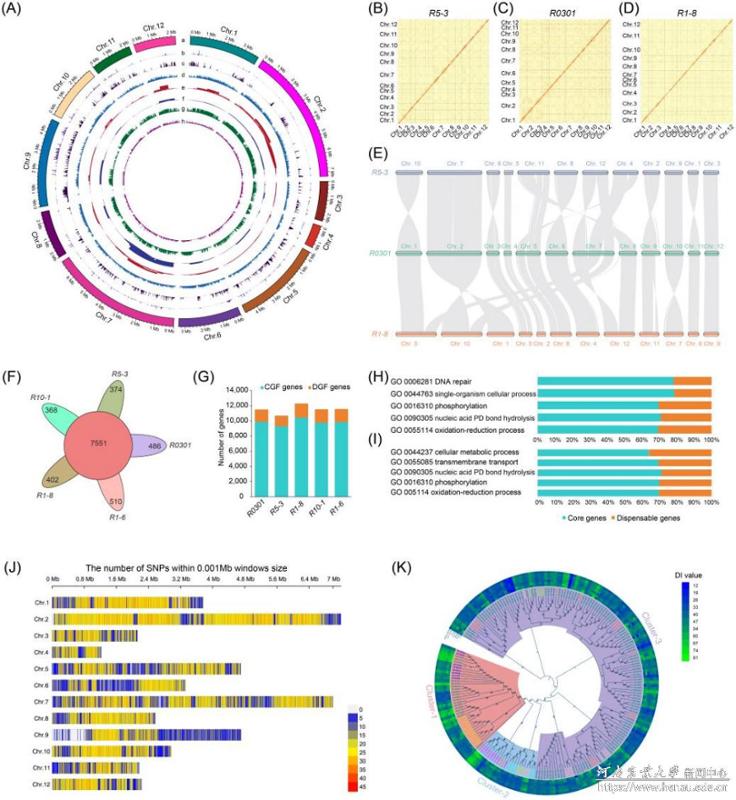
图2. 禾谷丝核菌基因组图谱与变异图
鉴定关键致病效应蛋白RcPL3:依托Rc基因组与变异图谱数据,团队进一步联合病原菌诱导转录组与全基因组关联分析(GWAS),成功鉴定出一个促进Rc侵染的关键效应蛋白RcPL3(图3A–E)。酵母蔗糖转化酶(SUC2)分泌实验表明,RcPL3携带功能性信号肽,可介导蛋白分泌至胞外(图3G–I)。进一步通过烟草瞬时表达与BAX诱导PCD实验证实,RcPL3能够显著抑制BAX诱导的程序性细胞死亡(PCD)(图3J)。经BSMV介导的VIGS沉默RcPL3后,小麦纹枯病病情指数(DI)显著降低;而在小麦中过表达RcPL3则显著提高纹枯病DI值,表明RcPL3为Rc发挥致病性的重要效应蛋白(图3K–M)。
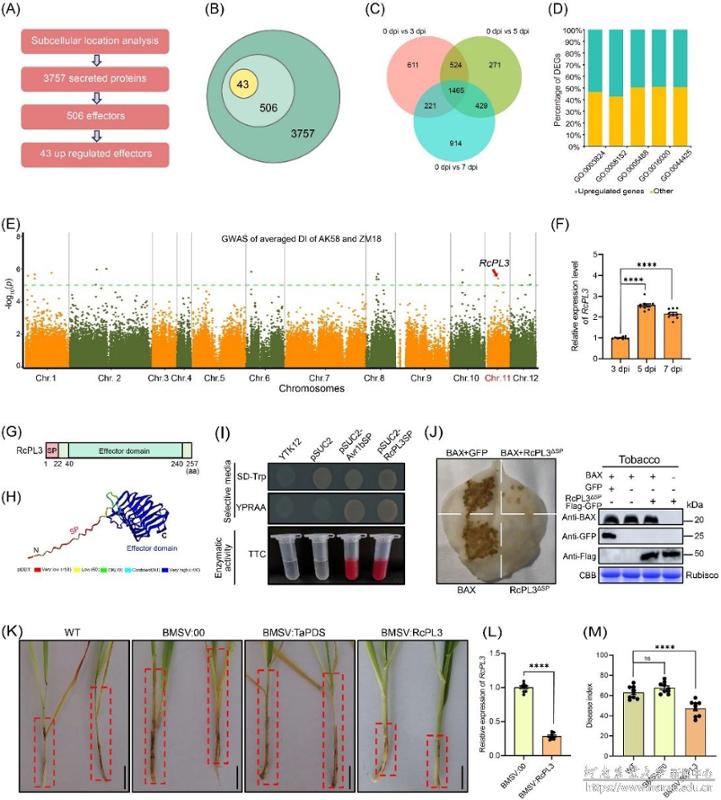
图3. 效应蛋白RcPL3的鉴定及功能验证
RcPL3通过促进TaHDA9的胞质积累抑制小麦纹枯病抗性:利用酵母双杂交技术筛选鉴定到RcPL3的互作蛋白TaHDA9(小麦去乙酰化酶),并通过多种蛋白互作实验确认二者存在直接互作(图4A–C)。研究发现,RcPL3与TaHDA9主要在小麦细胞质中发生互作;随着Rc侵染进程推进,TaHDA9由细胞核向胞质重新分布,同时RcPL3在胞质中持续积累,表明RcPL3可能促进TaHDA9的胞质积累(图4D–G)。结合蛋白结构预测与突变验证,进一步锁定TaHDA9第267位精氨酸(R267)为RcPL3识别和互作的关键位点(图4H–I)。免疫沉淀实验表明RcPL3可能通过调控TaHDA9的磷酸化、乙酰化等翻译后修饰,促进其由细胞核向胞质重新分布并提高其胞质积累(图4F–G、J–K)。进一步利用过表达和CRISPR/Cas9基因编辑材料的表型验证,证实TaHDA9负调控小麦纹枯病抗性(图4L–Q)。
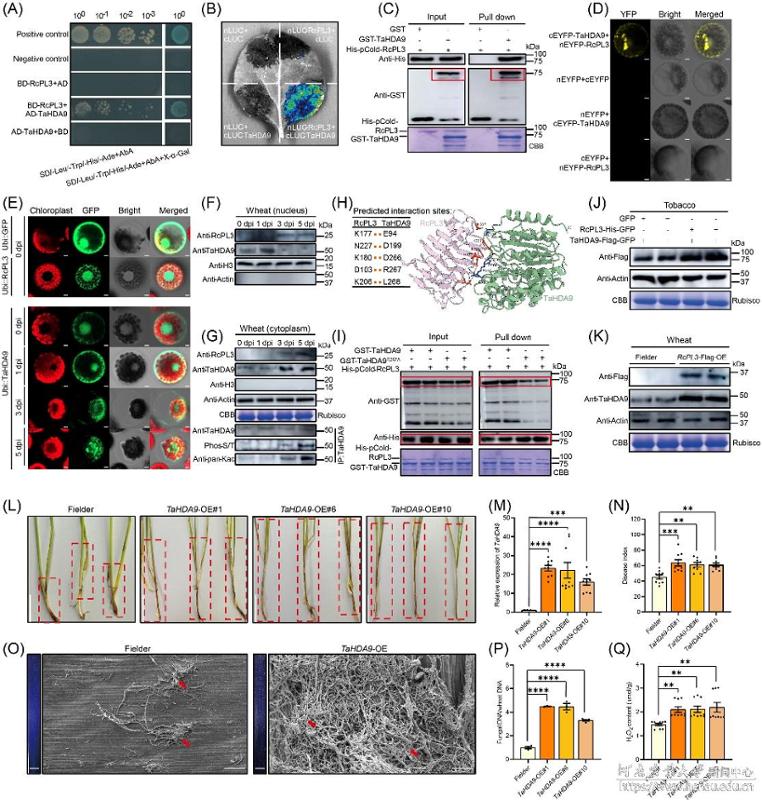
图4. RcPL3招募TaHDA9进而促进小麦纹枯病易感性
TaHDA9通过去乙酰化抑制TaRHC1A蛋白积累:发现RcPL3-TaHDA9的关键互作后,我们进一步探究TaHDA9调控小麦纹枯病的分子机制,借助酵母双杂交技术,鉴定到TaHDA9的互作蛋白——含RING结构域的E3泛素连接酶TaRHC1A。LCI、Co-IP和Pull-down等实验,证实TaHDA9与TaRHC1A存在直接互作;进一步通过亚细胞定位与BiFC实验发现,二者主要在小麦细胞质中发生互作(图5A–F)。作为去乙酰化酶,TaHDA9可显著降低TaRHC1A的乙酰化水平,并抑制其蛋白积累(图5G–J、M–O)。质谱分析进一步锁定TaRHC1A第222位赖氨酸(K222)为关键乙酰化位点;K222突变后,TaRHC1A蛋白稳定性进一步下降,且不再受到TaHDA9去乙酰化调控,表明TaHDA9可能通过去乙酰化K222促进TaRHC1A降解,从而降低其蛋白积累(图5K–L)。TaRHC1A过表达显著增强小麦纹枯病抗性,表明TaRHC1A是小麦纹枯病抗性的正调控因子(图5P–U)。
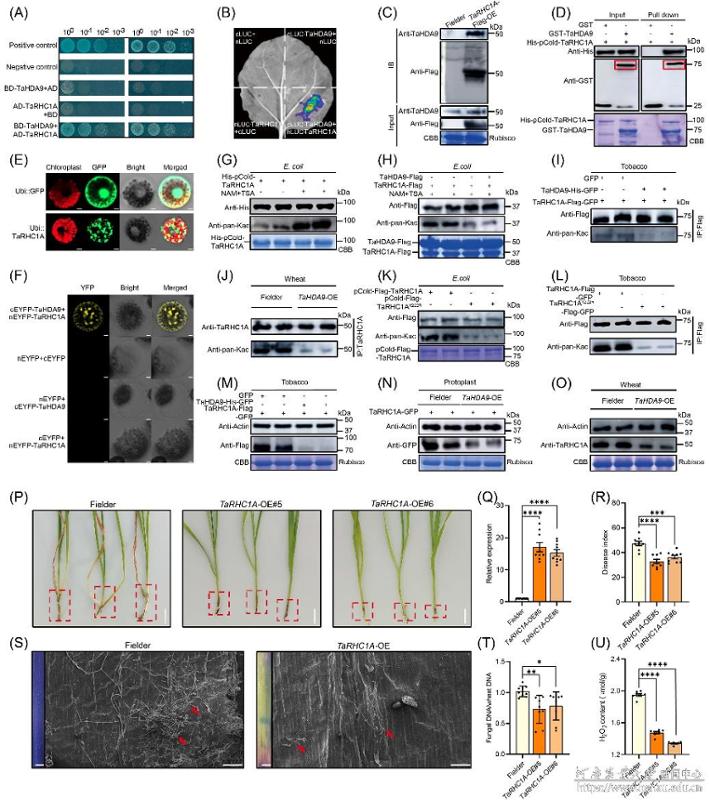
图5. TaHDA9通过去乙酰化TaRHC1A调控小麦纹枯病抗性
RcPL3–TaHDA9–TaRHC1A级联调控TaRBOH3降解与ROS积累:研究发现,RcPL3通过增强TaHDA9对TaRHC1A的抑制作用,削弱TaRHC1A的ROS清除能力,进而促进ROS积累(图6A–D)。过表达TaRHC1A能够上调抗氧化酶基因并抑制TaRBOH表达,从而降低ROS水平(图6E)。此外,TaRHC1A与TaRBOH3直接互作,并通过26S蛋白酶体途径促进其降解;沉默TaRBOH3则显著增强纹枯病抗性,表明TaRBOH3促进ROS积累并负调控纹枯病抗性(图6F–M)。进一步研究发现,RcPL3增强TaHDA9介导的TaRHC1A去乙酰化,降低TaRHC1A积累并促进TaRBOH3积累(图6N–Q)。最终解析出禾谷丝核菌通过效应蛋白RcPL3介导小麦植株TaHDA9-TaRHC1A-TaRBOH3免疫通路调控ROS促使纹枯病发生的分子机制,也即是RcPL3通过劫持TaHDA9解除TaRHC1A对TaRBOH3的负调控,诱导ROS大量积累,从而有利于Rc侵染小麦(图6R)。
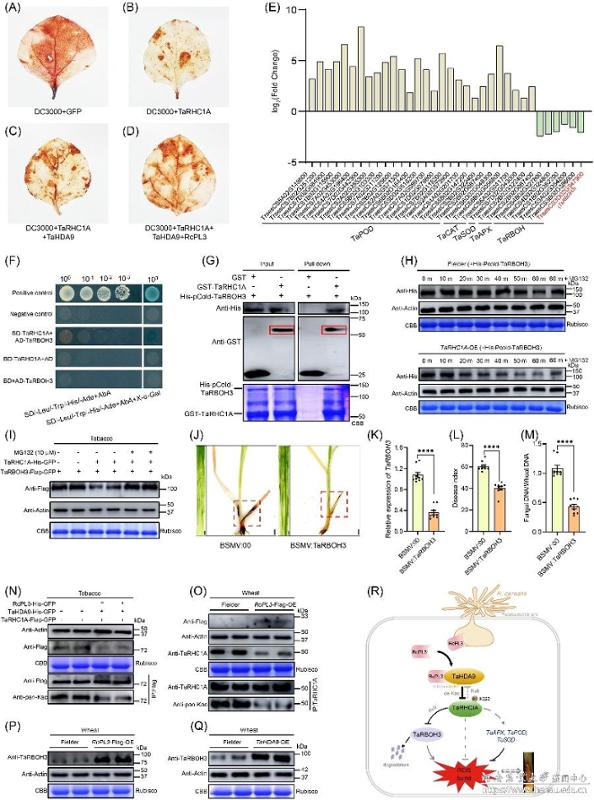
图6. RcPL3-TaHDA9-TaRHC1A级联调控小麦纹枯病抗性
HY-19741干扰RcPL3与TaHDA9互作赋予小麦纹枯病抗性:找到关键致病通路之后,研究团队进一步思考:能否靶向干预该通路,进而抑制禾谷丝核菌的致病性?为此,本研究基于上述分子通路开展绿色防控药剂筛选。结合计算机虚拟筛库与平皿扩散试验,从FDA获批药物库中筛选得到小分子化合物HY-19741。功能验证表明,HY-19741能够显著减弱RcPL3与TaHDA9之间的蛋白互作,以此阻断禾谷丝核菌的致病通路。更为重要的是,HY-19741能够显著提升小麦植株对纹枯病的抗性,具备良好的田间绿色防控应用潜力(图7)。该结果提示,靶向病原菌—宿主互作节点进行干预,有望成为小麦纹枯病绿色防控的新策略。
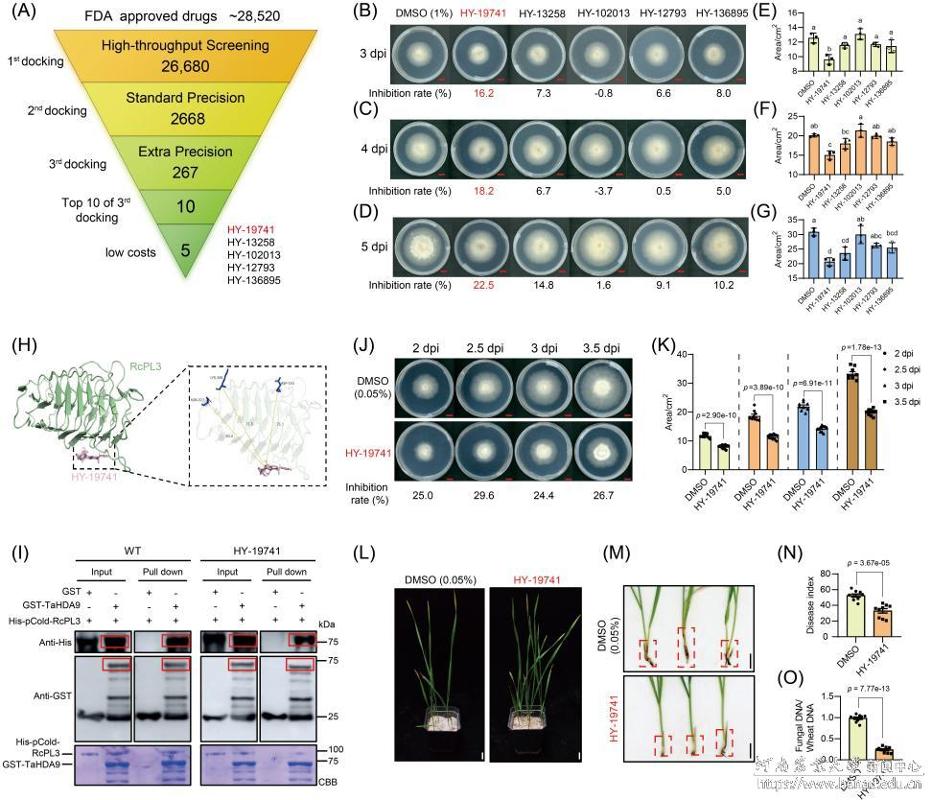
图7. 小分子化合物HY-19741可预防RcPL3介导的Rc侵染
综上,本研究通过大规模收集纹枯病菌感染小麦植株,发现禾谷丝核菌是引起我国小麦纹枯病发生的主要元凶;并分离鉴定和表型评估,获得优势菌株。进一步组装获得禾谷丝核菌高质量基因组并构建其变异图谱,鉴定到禾谷丝核菌关键致病效应蛋白RcPL3,解析了RcPL3通过胁持小麦植株中TaHDA9-TaRHC1A-TaRBOH3免疫模块促使纹枯病发生的新机制;同时筛选获得可显著抑制禾谷丝核菌侵染的小分子化合物HY-19741。研究从病原菌基因组变异、核心致病机制解析、寄主免疫调控及绿色防控药剂挖掘多个维度,系统阐释了禾谷丝核菌侵染小麦的分子机理,为小麦纹枯病抗病分子育种与病害绿色高效防控提供了重要理论依据。
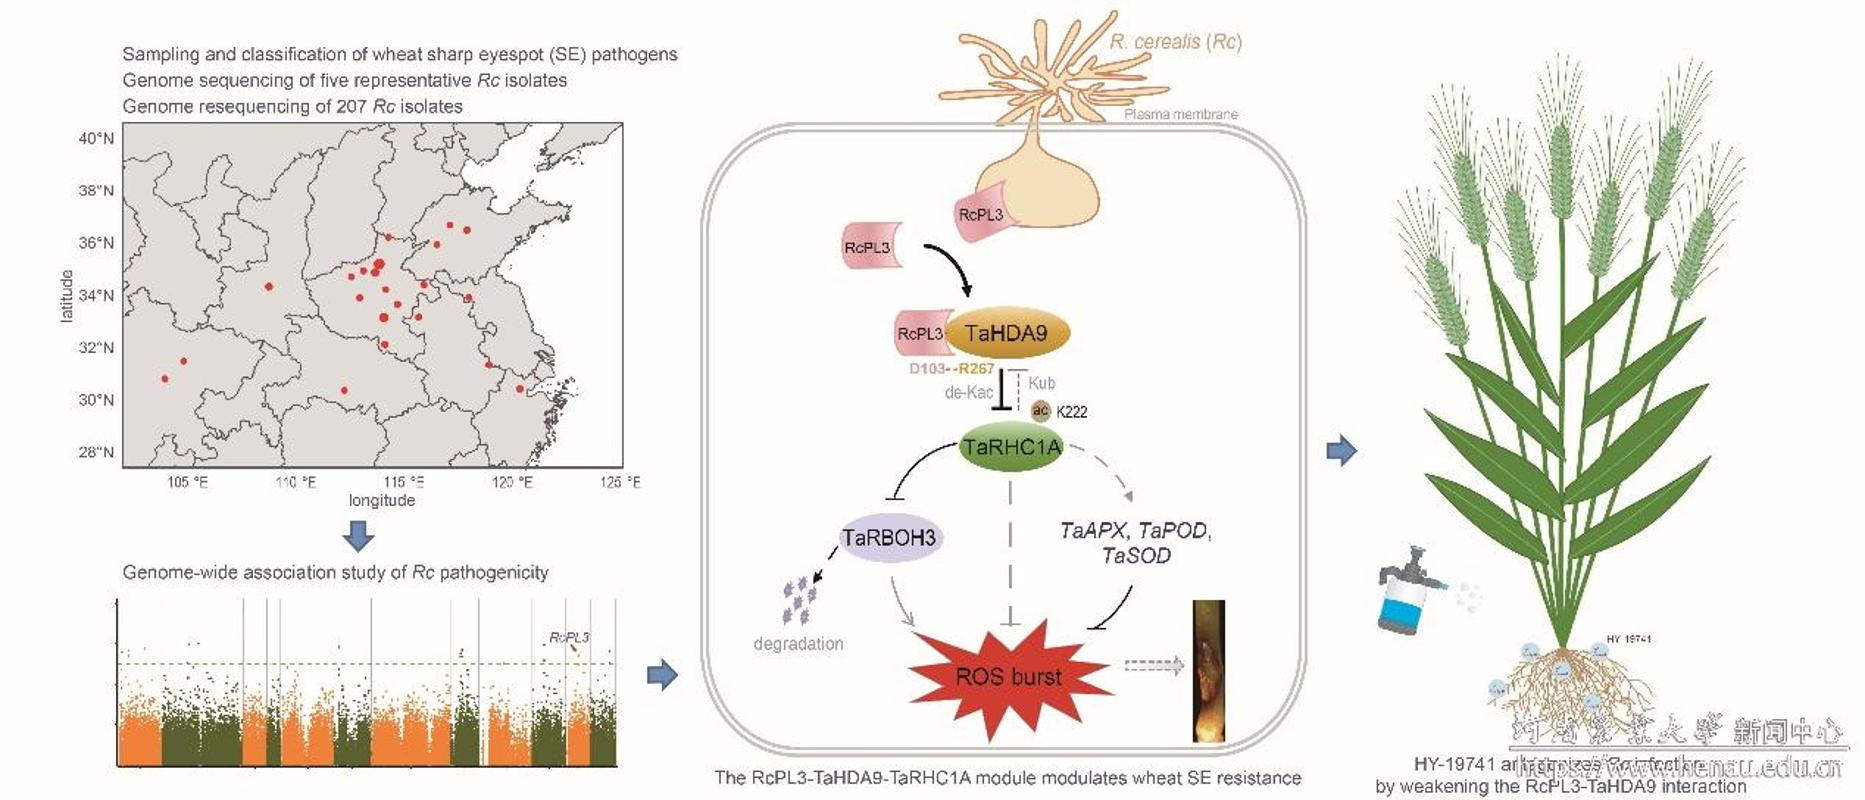
图8. 禾谷丝核菌侵染小麦机制及防御图
我校任妍教授和在读博士生刘倜为论文共同第一作者,陈锋教授、张宁教授为论文共同通讯作者。河南农业大学博士研究生赵贺莹、已毕业硕士生孙志鹏等为该研究做了大量辛勤的工作。河南农业大学青年教师孙丛苇副教授、贾奥琳教授等参与了研究。
感谢澳大利亚悉尼大学Robert A. McIntosh教授、清华大学生命科学学院刘玉乐教授对论文撰写的指导与建议。感谢阜阳市农业科学院冯家春研究员、徐州佳禾农业科技有限公司党新安总经理、山东农业大学刘树兵教授、淄博博信农业科技有限公司杨金老师、浙江省农业科学院华为研究员、长江大学王小燕教授、四川省农业科学院杨恩年研究员、绵阳市农业科学院任勇书记、西北农林科技大学孙道杰教授、新乡市农业科学院杨丽娟副研究员、信阳农林学院楚宗丽副教授协助采集病株样本;感谢江苏省农业科学院陈怀谷教授提供 R0301菌株,我校胡秀丽教授以及河北农业大学王逍冬教授提供部分实验载体,郑州大学位芳教授协助完成菌丝显微观察。该研究得到国家重点研发计划项目(2022YFD1201504)、国家自然科学基金(W2412001)、河南省自然科学基金-优青滚动支持项目(252300421246)以及河南省高校科技创新人才支持计划(24HASTIT055)资助。
原文链接: https://doi.org/10.1002/imt2.70174
编辑/黄璞 李培亚 审核/王金铎 签发/陈玺